關係幾何與載體展開・生物視覺分支 VIII:跨物種視覺的任務等價、觀測幾何與可反駁的比較判準
English title: Relational Geometry and Carrier Unfolding — Biological Vision VIII: Cross-Species Task Equivalence, Observational Geometry, and Falsifiable Comparative Criteria
研究系列: RGC-BV08;承接 RGC-BV01–BV07,幾何主線 RGC-P01–P12 另行保留
版本與日期: v1.0.0 / 2026-11-05
研究問題、載體幾何與跨物種比較構想: Neo.K
文獻核實、形式化、合成實驗與原稿協作: GPT-6
狀態: 可獨立重現的數學/模擬研究初版;非生物活體測量,未經同行審查。
Canonical source: 本 UTF-8、LF、無 BOM Markdown 原始檔。全部數學原始碼唯一採用 $...$ 與 $$...$$;聊天渲染與圖片不是正式原稿。
作者: Neo.K
機構: EveMissLab/一言諾科技有限公司
日期: 2026-11-05
版本: v1.0.0
摘要
BV01–BV06 分別以分層失焦、凹面反射、偏振感測及主動掃描,研究不同生物視覺載體如何改變可觀測關係。BV07 將異質感測器放進共同的場景—載體—觀察—任務框架,建立線性任務可辨識的核包含準則,並以附帶參考度量的 Fisher 資訊譜避免把任意座標尺度誤認為「1.XD 視覺」。然而,任務可辨識、任務執行表現與完整感測幾何並不是同一概念:不同載體可能達到相同辨識率,卻依賴不同物理線索;不同的觀測映射甚至可以精確重建同一個任務,卻保留不同的不可觀測方向。
本篇建立四個分層概念:原始場景狀態的觀測等價、給定任務的可辨識等價、給定環境分布與損失函數的決策風險等價,以及相對於同一任務狀態的統計實驗資訊序。在確定性線性情況,證明同一個深度任務可被兩個具有不同零空間的觀察算子精確恢復;在機率情況,重述資料處理與 Blackwell garbling 所提供的通用風險不劣界,並證明一項任務的相同成功率並不能推出全域資訊等價。
建立兩個物理線索不同、但對同一二元任務各具有 理論錯誤率的合成觀察通道。在條件獨立的假設下,兩通道逐次作答不一致率精確為 ,雖然其總辨識率完全相同。當只對其中一種線索施加破壞性刺激時,一方的錯誤率升至 ,另一方維持 。另以四類生物啟發但並非生物實測的四維線性觀察算子,建立可辨識任務矩陣及感測融合示範。20 項程式測試及 11 項獨立 SymPy 符號檢查通過;六種環境設定各進行 200,000 次合成觀測,共 1,200,000 次。
結果的意義是:跨物種視覺的功能相似,必須附帶任務、刺激集合、環境分布、損失函數、校準與反事實干預條件;不能僅由有效關係維度或單一行為成功率推回共同的內在視覺表示。 此項界線同時構成一套可反駁的後續比較程序,但並未實際測量任何生物的視覺維度或主觀經驗。
關鍵詞: 載體幾何;關係幾何;生物視覺;任務等價;觀測等價;Blackwell 資訊序;Bayes 風險;可辨識性;感覺線索解耦;感測融合;跨物種比較。
1. 研究問題與必要的概念轉向
1.1 從「能看見什麼」進到「能完成什麼」
RGC 最初以三條線透過幾何載體形成四邊正方形為引子,區分來源線條、載體、映射及觀測結果。生物視覺系列以自然感覺系統檢視同一原則:物理場景並未因生物不同而改變其普通空間軸數,但生物接收與處理的光學關係可以不同。
至 BV07,我們已有共同感測算子及資訊度量。然而,比較可能出現以下兩個看似矛盾、其實相容的事實:
- 兩個生物可以用不同線索完成相同的「發現目標」任務,但每次所偵測到的目標、位置及錯誤型態不一定相同。
- 兩個觀測載體具有相同的可辨識秩或有效關係譜參與數,卻可能分別只能辨識深度與偏振,不能互相代替。
因此,數值型有效維度是感測關係摘要,不是跨物種感覺內容的完整身分證。 本篇不以多感測器融合取代這一結論,而是建立一個從數學等價到可實際反駁的比較層級。
1.2 四個必須區分的等價層次
| 層次 | 比較對象 | 所需額外條件 | 不可直接推出 |
|---|---|---|---|
| 觀測等價 | 哪些原始狀態會產生相同讀數 | 完整前向映射或觀測分布 | 神經表徵或感覺經驗相同 |
| 任務可辨識等價 | 某個量是否能由觀測精確確定 | 指定任務、模型域 | 有雜訊時同樣精確 |
| 決策風險等價 | 特定環境下的最小預期任務損失 | 先驗、損失函數、可用決策規則 | 所有新環境下仍等價 |
| 統計資訊等價/優序 | 對一族決策問題何者包含更多資訊 | 同一潛在狀態與實驗、允許的隨機後處理 | 不同生物實際處理成本或認知一致 |
這些層級之間不能省略量詞。例如「在一個任務上風險相同」遠弱於「對所有任務、所有先驗與所有損失的風險相同」。
2. 生物學參照:可靠證據與推論禁區
2.1 跳蛛的失焦距離感知
Nagata 等人於 2012 年以 Hasarius adansoni 研究分層視網膜及距離行為,發現光譜所影響的失焦程度會改變距離判定 [R1]。它提供的是「特殊光學載體使失焦成為可用深度線索」的實驗證據;無法由此推得跳蛛的完整神經解碼演算法,更不能指定其有效關係維度為某個非整數。
2.2 扇貝的反射視覺
扇貝的凹面鏡光學、雙視網膜與微觀鳥嘌呤晶體結構已有直接研究 [R2]。反射式成像與感光反應不等同於一個已實測的「深度逆運算」。其雙視網膜的生理功能並不完全相同,而且活體扇貝的瞳孔會隨亮度改變,進而影響靈敏度與空間解析度 [R3, R4]。因此對扇貝最合理的比較任務可能包含移動目標、明暗變化與目標感知,而不應強行認定其主要任務是精密測距。
2.3 螳螂蝦的主動偏振視覺
Daly 等人於 2016 年研究兩種口足類的眼球扭轉,觀察到牠們利用相對偏振方向調整受器,以提高目標與背景的偏振對比 [R5]。這證實主動改變感測幾何確實可影響資訊取得,但不等於牠們一定執行完整 Stokes 向量反演,也不能由偏振感測器數量直接推算視覺品質。
2.4 非等價刺激的陷阱
若要比較動物對同一物體的視覺能力,就必須核對該物體在不同光譜、偏振、時間頻率與可見角度條件下實際輸入了什麼刺激。「把同一張 RGB 圖顯示在螢幕上」不保證兩個物種接收到相同的光學資訊。本稿的示範使用共同抽象場景,不等於已經解決跨物種刺激光譜校準。
3. 定義:載體、任務與決策風險
定義 3.1|共同場景與載體觀測
令外部場景狀態為 ,比較條件(環境、動作、載體狀態)為 。視覺載體 的觀測由統計核表示:
對指定視覺任務,令標籤或連續目標為 ,損失函數為 。在共同環境分布 下,允許的決策規則為 。
定義 3.2|任務條件下的最小 Bayes 風險
若兩個載體在指定的 下得到相同最小風險,稱為該比較條件下的任務風險等價。它不表示兩者的觀察讀數一樣,也不表示它們在不同先驗或新任務下風險相同。
定義 3.3|確定性觀測纖維
若忽略噪音,取載體觀察為 。定義原始狀態的不可區分關係:
兩個載體在整個原始場景上有相同觀測分割,意指兩者的等價關係 相同。這比「某一個任務能恢復」嚴格得多。
定義 3.4|線性任務可辨識性
當 與任務 均為有限維線性映射,且原始場景沒有額外限制時,繼承 BV07 的判準:
存在一個線性後處理 使 ,是上述判準的等價表述。此命題是經典線性代數,不是本篇原創的新定理。
4. 定理:同一任務可辨識,不代表相同幾何
定理 4.1|不同觀測幾何的共同任務構造
令場景狀態 ,取:
則兩個觀測載體都能唯一恢復任務 ,但兩者的原始觀測分割不同。
證明。 兩個載體的第一列均測量 ,因此取後處理 就有 。另一方面, 包含 方向而不包含 方向; 包含 方向而不包含 方向,故 。兩者在深度任務可辨識,但不是原始場景的幾何資訊等價。證畢。
推論。 若一個行為實驗只測量深度判定正確率,即使兩系統都達滿分,也無法排除其餘可見特徵完全不同。觀測到的任務等價不能被寫成對兩種生物內部空間表示的直接等價。
定理 4.2|對所有確定性任務的模擬與核包含
若兩個無噪音線性載體 具有相同定義域,則存在線性 使 ,當且僅當 。因此,A 可以透過後處理重建 B 的所有測量,當且僅當 A 的不可觀測方向包含於 B 的不可觀測方向之內的反向包含關係成立。
證明。 方向「存在 」時, 蘊含 ,故核包含成立。反向則在 上定義 ,核包含保證定義良好,再把 延拓至整個輸出空間。證畢。
這項判準只適用指定的線性無噪音情形;若通道包含噪音,後處理是否能模擬整個輸出分布必須另外判斷。
5. 統計資訊優序、後處理與任務風險
定義 5.1|觀測的隨機降階
若對同一潛在狀態 ,存在一個不再依賴 的 Markov 後處理核 ,使:
則 B 的觀測是 A 的隨機後處理結果,稱 A 在這個統計實驗上不弱於 B。此為既有 Blackwell 資訊比較理論的基本概念 [R6]。
定理 5.2|降階不會改善所有決策問題的最佳風險
在定義 5.1 條件下,對任意相同的先驗、任務及有界或可積損失,若允許隨機決策規則:
證明。 A 可先對自己的讀數施加 ,產生一個分布與 B 真實讀數相同的合成讀數,再執行 B 的任意決策規則。故 A 的可行決策族至少包含對應於 B 的所有隨機決策;對兩者取最小風險得到不等式。證畢。
這仍不能推得某個物種在實際行為上一定優於另一物種;時間、代謝、神經解碼、視覺注意力及動作限制不在此定理中。
反例 5.3|沒有全域資訊排序的兩個載體
對二元場景 ,令 A 完全讀取 ,B 完全讀取 。對任務 ,A 可得到零誤差而 B 在獨立均勻先驗下不能;對任務 ,結論正好相反。因此兩者不可能在所有任務上構成同一個優劣排序。
命題 5.4|二元對稱通道的可控降階
若 A 觀察一個對稱二元通道,錯誤翻轉機率為 ;再透過獨立翻轉機率 的後處理,則總錯誤率為:
取 , ,得到 。這是對資料處理優序的一個精確有理數見證;並不是任何物種的實際辨識率。
6. 主要合成反例:相同成功率,逐次辨識仍大量不同
定義 6.1|共同任務與兩個不同的感測線索
令二元任務標籤 。兩個不同載體產生:
其中 為模 2 加法, 在給定 後相互獨立,且:
這裡兩個通道可分別代表兩種不同的抽象物理線索,例如以失焦推得的目標線索與以偏振推得的目標線索。模型並未宣稱任何真實物種的神經噪音必然服從此伯努利分布,也不宣稱這些線索在自然環境中條件獨立。
定理 6.2|任務成功率相同,逐次輸出可以不同
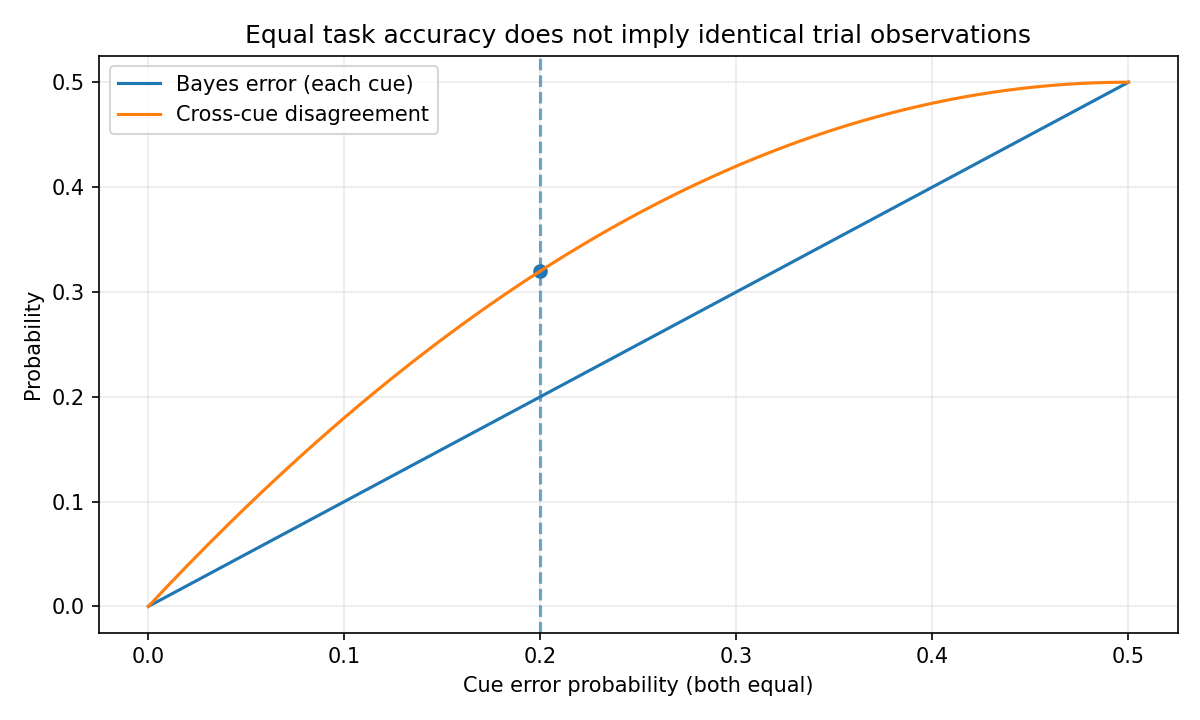
在上述對稱先驗及 0–1 損失下,兩個 Bayes 最佳解碼器都直接輸出自身的讀數,分別具有最小錯誤率 與 ;逐次輸出不一致率為:
證明。 在 且先驗均勻時,讀數自身是最大後驗決策,因此錯誤率為 。由於 等價於 ,且兩個噪音位元獨立:
合併即得。證畢。
精確見證 6.3|同樣 80% 正確率,32% 的逐次回答不同
取 ,兩者理論正確率同為 ,但:
對僅把 當成潛在狀態的統計實驗,這兩個二元對稱通道其實具有相同的條件輸出分布;然而它們在同一次試驗對應到的實現值仍可能不同,而且各自所需的物理感測線索可以不同。若將場景擴張到保留具體線索身分,便不能把這項任務層次的等價直接升級成整個場景的觀測等價。
反例 6.4|單獨解耦某個線索,任務等價立刻消失
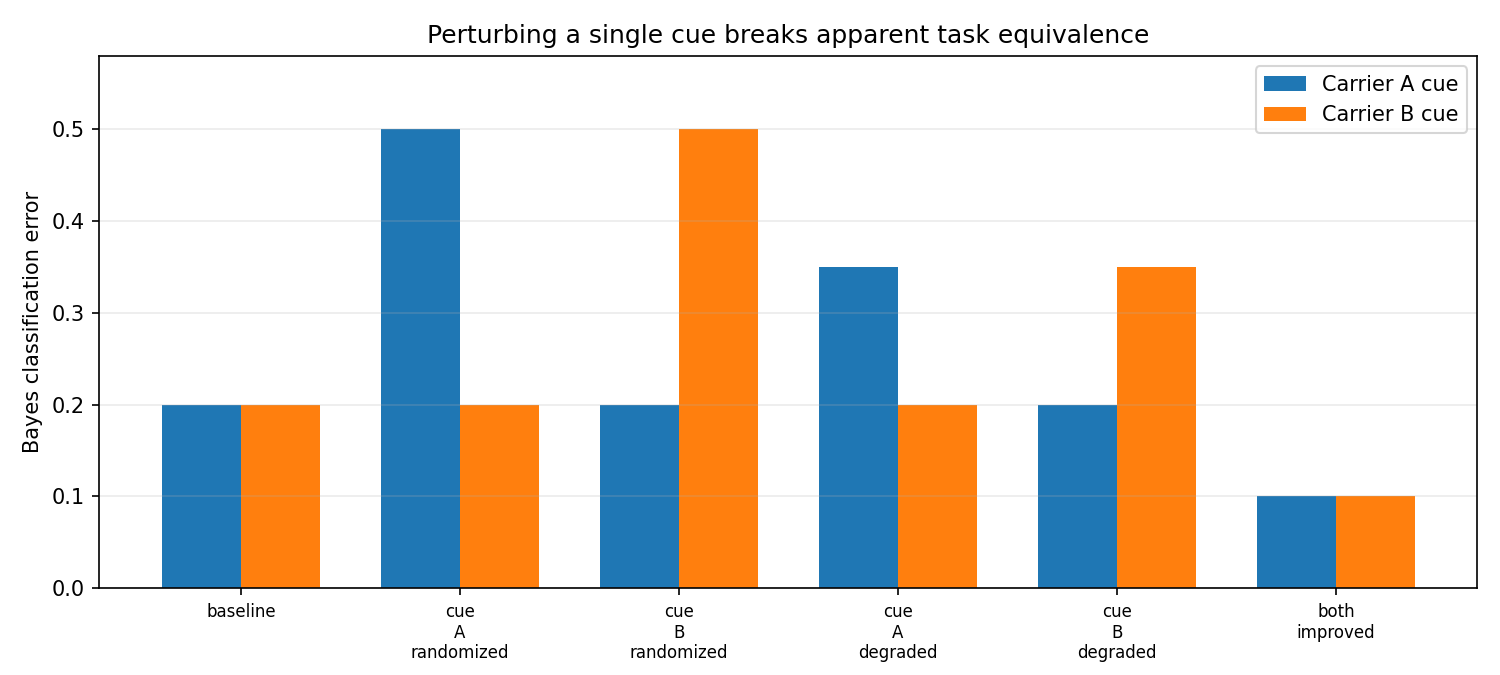
若一個實驗條件只使 A 的線索與標籤獨立( ),而 B 的線索仍維持 ,則 A 的最佳錯誤率為 ,B 仍為 。對 B 的線索施以相同介入,結論反轉。
因此在固定自然環境下觀測到相同成功率,不足以建立不受環境轉移影響的視覺任務等價性。真正可反駁的比較須包含線索的分離、遮蔽、方向轉換或受控去相關條件。
7. 四類視覺載體的共同幾何合成基準
7.1 場景與候選算子
以無量綱場景參數 ,分別表示深度、偏振、運動和亮度。設四類合成、非物種實測的線性測量載體為:
依序標記分層失焦、反射雙層、旋轉偏振及主動線掃描的抽象研究角色。所有係數刻意選定為 0 或 1,目的是把任務差異用最小例子表達,而不是擬合任何視網膜、光學透鏡、神經或行為資料。
7.2 任務可辨識矩陣
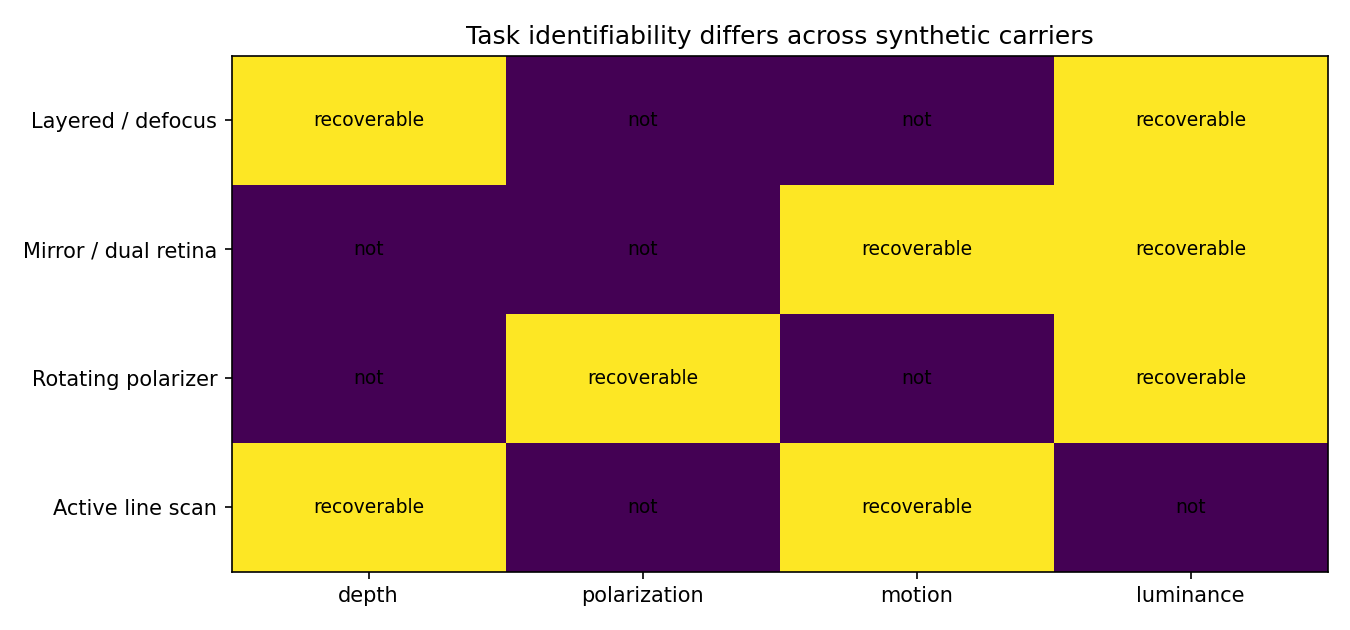
定義四個座標任務分別為 、 、 、 。對每一載體依定理 3.4 求得:
| 抽象載體 | 深度 | 偏振 | 運動 | 亮度 | 原始秩 |
|---|---|---|---|---|---|
| 分層失焦類比 | 是 | 否 | 否 | 是 | 2 |
| 反射雙層類比 | 否 | 否 | 是 | 是 | 2 |
| 主動偏振類比 | 否 | 是 | 否 | 是 | 2 |
| 主動掃描類比 | 是 | 否 | 是 | 否 | 2 |
所有載體的原始秩同為 2,卻沒有兩個載體能完成完全相同的四項任務集合。這是「同樣的有效觀測自由度,不等於同樣的任務能力」的直接線性代數示範。
7.3 載體融合並不只是在增加數字
將不同測量依共同場景座標堆疊,可以得到:
| 融合配置 | 可辨識秩 |
|---|---|
| 2 | |
| 3 | |
| 4 | |
| 4 |
新增一個載體只在它提供新的觀察子空間時才增加秩。更大的感測通道數量並不等於更大的可辨識維度;觀測噪音、校準與幾何位置依然決定反演穩定性。
8. 關係幾何維度化的邊界:相同 1.X 不等於相同視覺
BV07 定義的附帶參考度量 的有效參與數為:
在所有 時另定義其值為 0。該量在 一起做合法座標變換時保持不變,但它不是對任務內容的一一編碼。
反例 8.1|相同 1.8、不同資訊方向
於三維共同場景中取 、 與 。兩者都具有廣義本徵值多重集合 ,所以:
但 對第一個場景方向有資訊, 對第一個方向完全無資訊。對「恢復第一個參數」任務,它們的能力截然不同。故即使使用坐標不變的參與數,單一 1.XD 值仍不足以建立完整跨物種視覺幾何等價。
若想比較幾何任務,至少要保存 相對於共同場景度量的本徵方向、觀測核、噪音模型與目標任務;更一般的非線性情況還要考慮全域觀測纖維。
9. 精確理論與可重現合成實驗
9.1 實驗設計
程式 src/bv08.py 使用 NumPy 實現四種線性觀測矩陣、全部 16 個「載體 × 任務」判斷、四種融合配置,以及兩個條件獨立的二元對稱通道。實驗使用固定種子 20261105 開始,六種環境情境各進行 200,000 次合成觀測,共 1,200,000 次。
對每個線性可辨識判斷,除了矩陣秩的計算,還在 4 個二元場景參數的所有 16 種狀態上逐一枚舉觀察纖維,以獨立邏輯再次檢查。對二元通道,所有誤差與分歧理論值都使用 Python Fraction 精確有理數取得,隨機模擬僅檢查是否接近理論,不被當作精確證明。
9.2 理論風險與合成結果
| 條件 | A 理論錯誤率 | B 理論錯誤率 | 理論逐次分歧率 | 200,000 次合成 A 錯誤率 | B 錯誤率 |
|---|---|---|---|---|---|
| 基準 | 0.20 | 0.20 | 0.32 | 0.20198 | 0.19970 |
| 僅 A 線索隨機化 | 0.50 | 0.20 | 0.50 | 0.49915 | 0.199695 |
| 僅 B 線索隨機化 | 0.20 | 0.50 | 0.50 | 0.20034 | 0.50004 |
| 僅 A 線索退化 | 0.35 | 0.20 | 0.41 | 0.34855 | 0.20019 |
| 僅 B 線索退化 | 0.20 | 0.35 | 0.41 | 0.19972 | 0.35034 |
| 兩者改善 | 0.10 | 0.10 | 0.18 | 0.10127 | 0.10084 |
報告的合成結果全部來自確定的偽隨機種子,精確理論值不依賴該種子。沒有執行動物測試、相機影像擷取或實際神經記錄。
9.3 如何解讀這些資料
在基準條件,兩種視覺線索對同一二元任務具有相同的最佳理論表現;這不意味著它們擁有共同的視網膜幾何或相同內部影像。更重要的是,對單一線索的干預可以使兩種載體原先的任務表現等價消失。這提供一個具體可反駁的比較策略:若一項跨物種的能力相似只在特定刺激統計下成立,應優先測試相同任務在改變線索關係時是否仍可維持。
但每個真實物種的物理線索不一定能被完全獨立操控;操控還可能改變注意力與行為狀態。因此,不能僅憑一次差異就宣稱已隔離唯一的感測機制。
10. 將理想模型轉化為生物視覺比較協議
本篇不要求或聲稱已完成活體介入實驗。若後續利用既有公開行為資料、非侵入式光學影像或合成刺激建立驗證,應依下列順序進行:
- 共同任務定義。 先將「距離估計」「辨識移動目標」「發現偏振對比」等任務精確定義,不把詞語相似當作任務相同。
- 刺激載體校準。 明確記錄光譜、偏振、亮度、時間解析度、距離、視角及物體運動;不同物種的有效刺激不能只由人眼 RGB 效果推定。
- 原始觀測與行為分離。 感受器可接收到的資訊、神經系統實際解碼的資訊以及行為決策表現應分成不同證據層。
- 對照干預。 分別改變深度線索、偏振線索、運動線索與強度線索,測量任務風險如何變動;應避免在不同條件下同時改動多個未校準因素。
- 任務等價檢驗。 在固定任務及刺激分布下比較行為表現,並測試這一結論對線索去相關、場景轉移和觀察成本的穩健性。
- 保留不可辨識結論。 即使外部行為在多個條件下相同,也只能支持相對於已測任務與刺激族的功能等價;在沒有神經證據時,不推論主觀體驗或完整內部幾何一致。
10.1 可反駁的研究假說
- H1|線索受限等價假說。 在基準刺激統計下成功率接近的兩種感測載體,可能在單一線索受控改變時出現系統性表現分離。若充分校準的擾動完全沒有區分兩者,則該假說在指定系統與條件下不獲支持。
- H2|觀察核優先假說。 在同一套目標任務中,測得的可辨識方向及觀察核,會比單一譜參與數更能解釋哪些任務可被恢復;若 1.X 單一值已能穩定預測全部任務,則本稿主張的額外方向資訊必要性需重估。
- H3|環境轉移破壞假說。 固定環境下的等決策風險未必能轉移至不同光照、偏振、運動或背景統計。這是可透過跨條件風險曲線評估的經驗命題,不是對全部生物的普遍定理。
10.2 研究倫理與適用邊界
本篇僅使用數學模型與合成數據,所有生物學證據來自文獻。任何進一步的動物行為研究都需要符合相關倫理、福利及主管機關要求;應優先使用既有資料與不造成傷害的觀察方式。本文沒有提出侵入式實驗需求。
11. 與 RGC 主線的關係
從三條線到正方形的原始問題,提醒我們「最終可觀察的幾何」不必與「來源的線條表示」完全相同。BV08 將此思想推向生物視覺的另一個面向:對同一個任務,不同載體可以透過不同的可觀察關係取得相同成果;但最終行為相似並不回證來源表示相同。
在數學層面,這可由三組不同的對象表達:
- 來源物理場景與光學線索集合;
- 載體前向映射及其觀察纖維;
- 指定任務、決策風險及允許的後處理。
當它們被混為同一層,便容易把「看起來畫出相同形狀」誤當成「具備相同載體幾何」,或把「兩者都能辨認目標」誤當成「兩者看見相同世界」。本篇的形式化目的,正是提供這種錯誤的明確反例。
12. 結論
本篇把跨物種視覺比較從資訊秩及有效參與數,推進至可檢驗的任務風險、觀測等價和線索干預。主要結論為:
第一,兩種載體可以精確辨識同一任務,而完整觀測幾何不同。第二,兩種載體在某種環境下可以有相同的 Bayes 風險,但每次判斷與環境轉移下的結果不一定相同。第三,觀測核、任務、場景分布、損失及校準對跨物種比較不可省略。第四,附帶度量的 1.X 有效關係參與數仍不足以取代完整的感測方向與任務描述。
在關係幾何中,相同的答案不必有相同的觀察路徑;相同的觀察路徑,也不保證觀察者保留了相同的世界。
參考文獻
- [R1] Nagata, T., et al. (2012). Depth perception from image defocus in a jumping spider. Science, 335(6067), 469–471. https://doi.org/10.1126/science.1211667
- [R2] Palmer, B. A., et al. (2017). The image-forming mirror in the eye of the scallop. Science. https://doi.org/10.1126/science.aam9506
- [R3] Speiser, D. I., & Wilkens, L. A. (2016). Neurobiology and Behaviour of the Scallop. Developments in Aquaculture and Fisheries Science, 40, 219–251. https://doi.org/10.1016/B978-0-444-62710-0.00005-5
- [R4] The mirror-based eyes of scallops demonstrate a light-evoked pupillary response (2019). https://pubmed.ncbi.nlm.nih.gov/31063719/
- [R5] Daly, I. M., et al. (2016). Dynamic polarization vision in mantis shrimps. Nature Communications, 7, 12140. https://doi.org/10.1038/ncomms12140
- [R6] Blackwell, D. (1953). Equivalent Comparisons of Experiments. The Annals of Mathematical Statistics, 24(2), 265–272. https://doi.org/10.1214/aoms/1177729032
- [R7] RGC-BV07 (2026-11-05). A Common Relational Geometry for Heterogeneous Visual Carriers, Task Identifiability, and Metric-Aware Invariants. 同系列前篇,以本研究包中明示的模型延伸。
附錄 A|程式重現
解壓後,在本研究包根目錄執行:
python -m unittest discover -s tests -v
python src/bv08.py --output results --figures figures
python src/symbolic_verify.py
python validate_source.py
重現使用 Python、NumPy、Matplotlib、SymPy;單元測試僅使用標準函式庫與 NumPy,獨立符號驗證使用 SymPy。輸出 results/benchmark.json、results/carrier_task.csv、results/ecological_shift.csv,並產生三組 PNG/SVG 圖。
精確有理數見證、合成資料及繪圖結果可以供計算機驗證;它們不能取代生物學資料。沒有跨工作階段調用外部模型,也沒有任何活體行為實驗。SHA-256 證明封裝檔案的一致性,不是外部學術背書。